 English
 中文
中心董波课题组发表上皮内陷的生物力学调控机制最新研究成果
2026年10月1日,中心董波教授团队与清华大学李博教授团队合作,在eLife发表题为“Bidirectional redistribution of actomyosin drives epithelial invagination in ascidian siphon tube morphogenesis”的研究论文。该研究以尾索动物海鞘出水管原基形态发生为模型,结合组织细胞成像、突变体、光遗传学操作与顶点模型模拟,系统的揭示了肌动球蛋白在细胞顶端与侧向之间的双向重分布驱动上皮内陷的力学新机制,为理解器官形态发生中的生物力学原理提供了全新视角。
上皮内陷是胚胎发育过程中多种器官形成的基础,例如神经管的闭合、气管和唾液腺的形态发生等。传统观点认为,顶端收缩是驱动上皮内陷的主要动力,但越来越多的研究表明,仅靠顶端收缩不足以塑造复杂的三维管状结构。那么,上皮细胞如何通过时空异质性的力学程序,协调完成连贯的组织重塑,一直是发育生物学与力学生物学交叉领域的核心挑战。
围绕这一问题,研究团队首先通过对海鞘出水管的F-actin染色,在多个时间点记录海鞘出水管原基细胞边界动态,精细描绘了出水管原基内陷的细胞学过程。并将该过程分为初始内陷和加速内陷两个阶段:在初始阶段(13.5-16.0 hpf),中心细胞高度增加,顶端/基底面积比下降,出水管原基处形成浅凹,内陷深度增长较慢;在加速阶段(16.0-18.0 hpf),中心细胞高度降低,内陷快速加深。
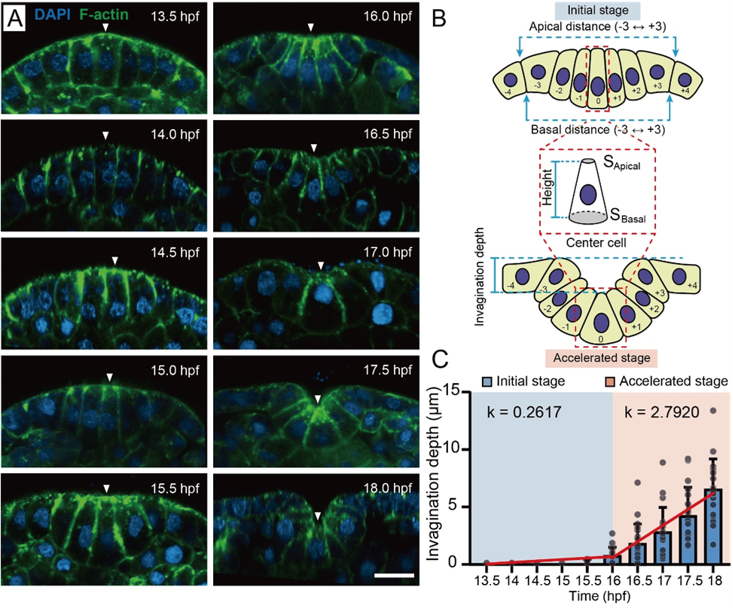
图1. 海鞘出水管原基内陷的细胞学过程(A)海鞘胚胎从13.5 hpf到18 hpf出水管形态发生的代表性荧光图像,白色箭头指示中心细胞。比例尺:10 μm。(B)测量参数:将内陷中心发生最显著顶端收缩的细胞定义为“中心细胞”(0),其左右相邻细胞依次定义为 -1、-2、-3、-4 和 +1、+2、+3、+4。(C)内陷深度定量,红线为初始阶段和加速阶段的线性回归拟合。
随后,研究团队利用抗pS19 MRLC抗体和F-actin标记,定量分析了肌动球蛋白在顶端、侧向和基底区域的分布。结果发现,肌动球蛋白在顶端与侧向之间发生显著的双向重分布:在初始阶段,侧向肌动球蛋白重分布至顶端,驱动顶端收缩并建立初始内陷;在加速阶段,顶端肌动球蛋白重分布至侧向,促进中心细胞缩短并加速内陷。
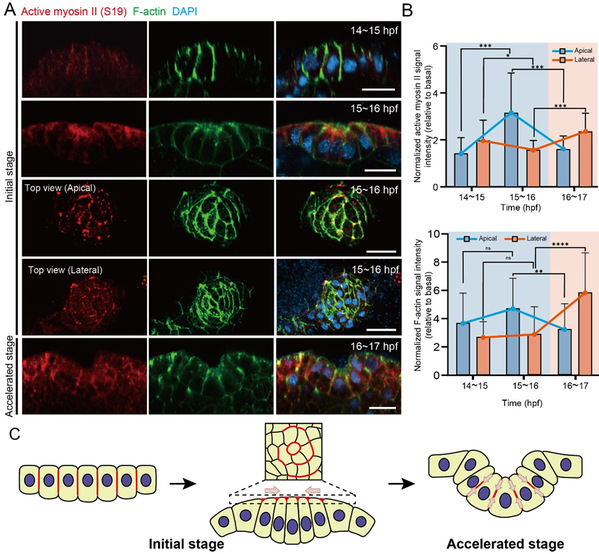
图2. 肌动球蛋白在顶端与侧向域间双向重分布。(A)不同阶段活性肌球蛋白II(anti-pS19 MRLC,红色)与F-actin(绿色)代表性图像。(B)中心细胞顶端与侧向活性肌球蛋白II和F-actin荧光强度定量。(C)肌动球蛋白双向重分布驱动出水管原基内陷的模式图。棕色箭头指示收缩力方向,红色区域表示活性肌球蛋白II定位。
为进一步干扰肌球蛋白提供的收缩力,研究团队通过过表达MRLC突变体调节肌球蛋白活性,结果显示,增强肌球蛋白活性使内陷启动更早、内陷更深、中心细胞更矮;降低肌球蛋白活性则延迟内陷启动。中心细胞高度降低与内陷深度增加高度耦合,提示肌球蛋白从顶端向侧向的重分布与内陷进程密切相关。在此基础上,研究团队利用光遗传学MLCP-BcLOV4系统,在顶端-侧向重分布的关键窗口期(16-17 hpf)特异性抑制肌球蛋白活性。结果表明,蓝光激活组在加速期的进一步内陷被阻断,中心细胞高度不再显著降低;免疫染色显示侧向p-MLC显著降低,而顶端肌球蛋白按正常发育程序下调,与暗对照组无显著差异。这说明,侧向收缩力的获得对加速期内陷是必需的。
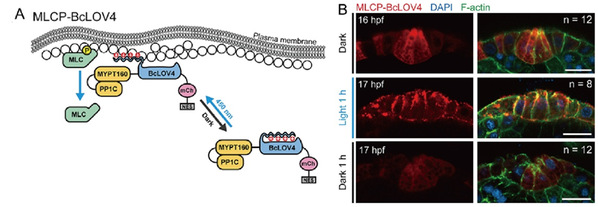
图3. 光遗传学抑制侧向肌球蛋白活性阻断内陷。(A)MLCP-BcLOV4系统结构及工作原理示意图。蓝光照射下,BcLOV4发生构象变化,与质膜发生静电相互作用,将PP1C和MYPT169招募至膜上,降低肌球蛋白活性。(B)MLCP-BcLOV4表达组在蓝光照射1小时后的发育进程,以及暗对照组在黑暗中维持1小时的发育进程。比例尺:10 μm。
为了验证力学机制,研究团队建立了基于细胞的二维顶点模型。该模型将海鞘胚胎头部横截面表示为环状排列的上皮细胞,内部支持组织简化为不可压缩体,并引入自由边界条件、细胞面积约束、被动皮层收缩、组织表面弯曲刚度以及时空调控的顶端/侧向主动线张力。成功再现了实验观察到的细胞形态变化和内陷过程。模拟进一步揭示,顶端收缩产生的顶端-基底张力失衡驱动组织对称性破缺,决定内陷的起始,而侧向收缩则促进细胞缩短并推动内陷加深。二者耦合是高效内陷的关键。该模型还预测,持续维持顶端收缩或过早增强侧向收缩均会改变形态发生轨迹,证明肌动球蛋白重分布的顺序具有重要力学意义。
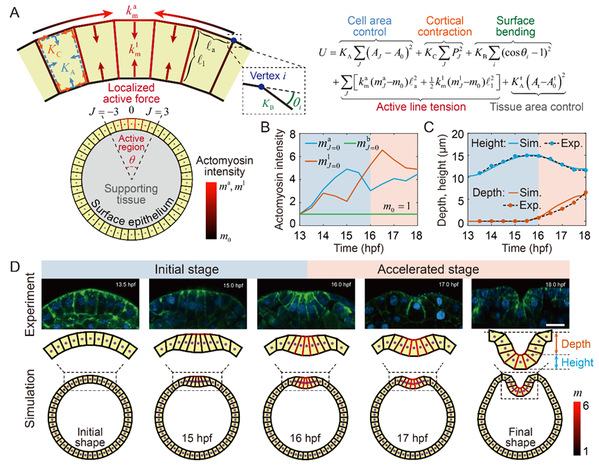
图4. 顶点模型。(A)基于细胞的顶点模型示意图及有效能量项。(B)根据实验F-actin分布参数化的顶端、侧向和基底肌动球蛋白强度随时间变化。(C)模拟与实验的内陷深度和中心细胞高度曲线对比。(D)模拟与实验形态快照对比,红色表示细胞边缘归一化肌动球蛋白强度。
与经典模型相比,本研究具有明显独特性。在果蝇腹侧沟内陷中,侧向收缩在后期并非绝对必需,且组织受卵黄膜刚性边界约束;而本研究发现,海鞘出水管原基内陷中侧向收缩在加速期是必需的,且组织处于无刚性边界约束状态。与海鞘内胚层内陷中顶端至基底外侧顺序收缩不同,本研究揭示的是顶端与侧向之间的双向重分布,机制更为动态和复杂。该研究还建立了适用于无刚性边界约束的顶点模型,为研究此类上皮形态发生提供了新框架。
该研究不仅揭示了肌动球蛋白双向重分布驱动上皮内陷的新机制,也为理解先天性发育缺陷(如神经管闭合不全、器官管腔形成异常等)的潜在病理基础提供了启示,同时展示了海洋模式生物在发育生物学与力学生物学交叉研究中的重要价值。
中心博士生乔靖涵和清华大学博士生于鹏宇为共同第一作者,中心董波教授和清华大学李博教授为共同通讯作者。课题组博士生彭鸿哲与施文杰参与了本项目工作。该研究获得了崂山实验室科技创新项目、国家自然科学基金和山东省泰山学者计划等项目资助。